- برگه تقلب تجزیه و تحلیل بین بازار
- داستان بزرگداستان طولانی کوتاه آمدن
- پیپ چیست و چگونه آن را محاسبه کنیم؟
- Binance Super Prophet: تجارت را انتخاب کنید ، از 100 کیلو دلار جوایز برنده شوید
- معاملات آینده دائمی / قراردادهای مبادله دائمی چیست؟
- راهی برای کسب دلار در بازار فارکس
- ارکستر پرداخت خط جهانی
- یک پسر از ChatGPT استفاده می کند تا 100 دلار را به یک تجارت تبدیل کند و "هرچه بیشتر پول" را تبدیل کند. در اینجا 4 مرحله اول که AI Chatbot به او داد.
- مبادلات کالا: نحوه خرید محصولات با کیفیت با قیمت عمده فروشی
- چگونه تصمیم بگیریم چه موقع سود را در سهام خود رزرو کنید
آخرین مطالب
امکانات وب


نوروفیزیولوژی شاخه ای از فیزیولوژی است که با عملکرد سیستم عصبی سروکار دارد. یعنی مطالعه خصوصیات عملکردی نورون ها ، گلیا و شبکه ها.
- از لحاظ تاریخی توسط الکتروفیزیولوژی حاکم شده است - ضبط الکتریکی حوادث عصبی اعم از مولی (الکتروانسفالوگرام ، EEG) تا سلولی (ضبط داخل سلولی خواص نورون های مجرد).
- از آنجا که نورون یک دستگاه الکتروشیمیایی است ، جدا کردن وقایع الکتریکی از فرآیندهای بیوشیمیایی و مولکولی که آنها را به وجود می آورد غیرممکن است.
- امروزه نوروفیزیولوژیست ها از تکنیک های شیمی (تصویربرداری کلسیم) ، فیزیک (تصویربرداری رزونانس مغناطیسی عملکردی ، FMRI) و زیست شناسی مولکولی (جهش های هدایت شده به سایت) برای مطالعه عملکرد مغز استفاده می کنند.[1]
در زیر شما همه چیز را در مورد یاد خواهید گرفت
- کانال های یون
- استراحت غشای و پتانسیل عمل
- اتصال عصبی عضلانی / سیناپس
- انتقال اعصاب
- انتقال دهنده های عصبی ، گیرنده ها و مسیرها
کانال های یونی [ویرایش |منبع ویرایش]
یک کانال یونی یک ماکرومولکول پروتئین است که از وسعت غشایی عبور می کند و اجازه می دهد مولکول ها از آن عبور کنند. یونها در جهت تعیین شده توسط شیب الکتروشیمیایی در غشای حرکت می کنند.
- یونها تمایل به جریان از ناحیه ای از غلظت بالا به ناحیه ای از غلظت کم دارند.
- در حضور شیب ولتاژ ، با وجود غلظت نابرابر ممکن است هیچ جریان یون ها وجود نداشته باشد.
- کانال های یونی می توانند باز یا بسته باشند.
- با تغییر ولتاژ در غشای ، یا اتصال یک ماده شیمیایی به یک گیرنده ، باز می شود.
- مهمترین نقش این است که آنها تحریک پذیری الکتریکی را در اختیار نورون قرار می دهند.
- در تمام قسمت های نورون و به میزان کمتری در سلولهای عصبی یافت می شود.
انواع کانال [ویرایش |منبع ویرایش]
- دره ولتاژ
- شیمیایی فعال
- کشش/فشار مکانیکی.
خصوصیات اساسی یک کانال یونی [ویرایش |منبع ویرایش]
- این مجموعه از تعدادی از واحدهای زیر پروتئین تشکیل شده است که در سرتاسر غشای نشسته اند و به یونها اجازه می دهند از یک طرف به طرف دیگر عبور کنند.(منافذ transmembrane)
- کانال باید بتواند از حالت باز به حالت بسته و به عقب حرکت کند.
- باید در پاسخ به محرکهای مناسب بتواند باز شود.
برخی از کانال ها به محرک شیمیایی پاسخ می دهند (به ویژه در سیناپس). این کانال ها گیرنده های خاصی برای آن شیمیایی دارند که منجر به باز شدن کانال می شود.
غشای استراحت و پتانسیل عمل [ویرایش |منبع ویرایش]
- در حالت استراحت ، غشای سلول عصبی نسبت به یون ها نسبتاً غیرقابل نفوذ است. این برای تولید پتانسیل غشای استراحت بسیار مهم است.
- عمده یون داخل سلولی پتاسیم است (در مایع خارج سلولی سدیم است).
- جریان طبیعی یون ها از طریق شیب غلظت آنها این است که K + از سلول و Na + وارد شود.
- این حرکت یون ها از سلول منجر به پتانسیل غشای منفی می شود - ابر قطبی شدن.
- برعکس در مورد هجوم نسبی یونها - هیپوپلاریزاسیون صادق است.[2]

غشای استراحت نسبت به یون های Na+ نسبتاً غیرقابل نفوذ است ، در حالی که در برابر یونهای K قابل نفوذ است. بنابراین ، هنگامی که غشای در حال استراحت است ، تمایل به پخش شدن یونهای K+ از سلول وجود دارد ، شیب غلظت آن را پایین می آورد و بار منفی بیش از حد را پشت سر می گذارد. این کار تا زمانی که شیب غلظت شیمیایی که K+ را از سلول بیرون می کشد ، دقیقاً در نقطه ای است که با اختلاف پتانسیل الکتریکی ایجاد شده توسط این جریان جبران می شود.(پتانسیل غشای) K+ دوباره به داخل سلول کشیده می شود.
این حالت پایدار غشای پتانسیل تعادل نامیده می شود.
معادله برای استخراج پتانسیل تعادل ، معادله Nest نامیده می شود.
در واقع به دلیل نفوذپذیری اندک در یونهای سدیم غشای غشایی در حالت استراحت ، بار مثبت کمی غیر منتظره در آکسون ها وجود دارد. این توسط پمپ تبادل Na+/K+ وابسته به ATP جبران می شود. من 3 یون Na+ را برای هر یون 3K+ که به سلول آورده شده است ، پمپ می کنم. با این حال ، این تنها به پتانسیل غشای استراحت سلول کمک می کند.
پتانسیل عمل [ویرایش |منبع ویرایش]
تعریف شده به عنوان "تکانه الکتریکی منفرد که از آکسون عبور می کند".
این همه یا هیچ چیز در عمل آن نیست. این بدان معنی است که پس از دستیابی به شدت محرک آستانه ، پتانسیل عملی ایجاد می شود.
اطلاعات موجود در سیستم عصبی با فرکانس شلیک کدگذاری و تفسیر می شود ، نه با اندازه پتانسیل عمل.
شدت محرک آستانه: مقداری که در آن جریان خالص داخلی (تعیین شده توسط یون های Na+) فقط بیشتر از جریان بیرونی خالص (حمل شده توسط یونهای K) است. به طور معمو ل-55mV (آستانه شلیک بحرانی) است
AP به راحتی در آکسون تپه رخ می دهد زیرا این جایی است که چگالی بیشتری از کانال های یونی Na+ وجود دارد. به همین دلیل این محل شروع AP در نورون است.
در صورت عدم دستیابی به آستانه ، پتانسیل عمل تولید نمی شود و انتقال سیگنال در آن نقطه خاتمه می یابد.
توالی وقایع برای ایجاد پتانسیل عملی
- ولتاژ دپلوریزه کانال های یونی Na+ ولتاژ را در غشای عصبی فعال می کند: یونهای سدیم+ در شیب الکتروشیمیایی جریان می یابند. غشای بیشتر دفع می شود. کانال های NA+ بیشتر در یک حلقه بازخورد مثبت باز می شوند. هنگامی که جریان داخلی یونهای سدیم بیشتر در مقایسه با جریان یونهای K وجود دارد ، باز شدن سریع تمام کانال های Na+ وجود دارد. این غشای را به سمت پتانسیل تعادل برای Na+(+55mV) جدا می کند. سنبله AP تولید می شود ، اما نمی تواند به تعادل برسد. پتانسیل Na+ به دلیل افزایش جریان K+.
- هرچه کانال های Na+ کمتر فعال می شوند ، AP سقوط می کند. این غیرفعال بودن وابسته به ولتاژ است. در مرحله سقوط ، جریان K+ از اهمیت بالایی برخوردار است زیرا منجر به یک دوره کوتاه از فشار خونریزی غشایی قبل از غیرفعال شدن می شود.
- پتانسیل غشای به حالت استراحت باز می گردد.
اتصال عصبی عضلانی / سیناپس [ویرایش |منبع ویرایش]
سیناپس [ویرایش |منبع ویرایش]
سیناپس محل اتصال دو نورون است. سیناپس شیمیایی غالب موجود در سیستم عصبی است ، اما سیناپسهای الکتریکی در سلولهای قلبی و سلولهای گلیال یافت می شوند.
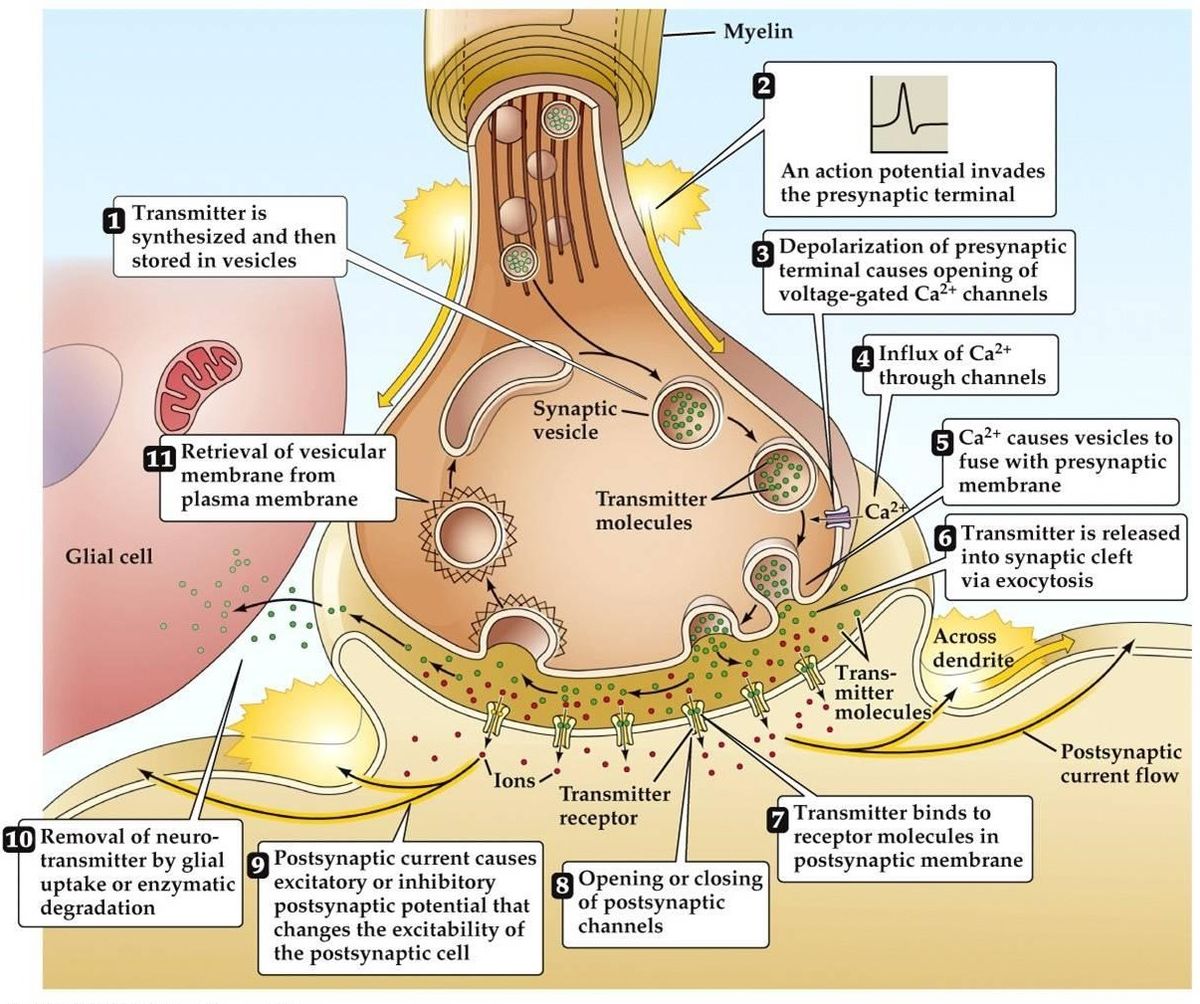
انتقال سیناپسی [ویرایش |منبع ویرایش]
- پتانسیل عمل وارد می شود ، منجر به دفع قطبی ترمینال پیش سیناپسی می شود. کانال های CA2 وابسته به ولتاژ در مناطق فعال ترمینال باز می شوند. این منجر به هجوم Ca2+می شود.
- هجوم Ca2+ منجر به فسفوریلاسیون و تغییر میزان پروتئین های اتصال کلسیم پیش سیناپسی می شود. این امر وزیکول را از شبکه اکتین پیش سیناپسی خود آزاد می کند ، سپس به غشای پیش سیناپسی متصل می شود.
- همجوشی وزیکول به غشای منجر به تشکیل یک کانال کوچک می شود که به سرعت گسترش می یابد و محتوای آن را در شکاف سیناپسی آزاد می کند. غشای وزیکول توسط اندوسیتوز بازیافت می شود.
- انتقال دهنده عصبی منتشر شده در شکاف سیناپسی با هدف اتصال به گیرنده پس سیناپسی پخش می شود.
- فعال سازی گیرنده پس سیناپسی منجر به تغییر در پتانسیل غشای پس سیناپسی می شود.
- تئوری های جایگزین وجود دارد که نشان می دهد انتقال دهنده عصبی از طریق مولکول ها یا کانال های غشایی به جای وزیکول تحویل داده می شود.
هدایت عصبی [ویرایش |منبع ویرایش]
انتشار بالقوه عمل با گسترش جریان محلی انجام می شود.
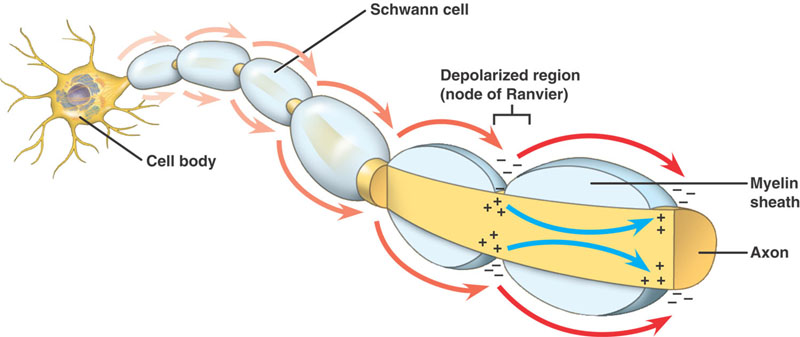
اگر اندازه آن بالاتر از قطر مشخص باشد ، عصب با میلین عایق بندی می شود ، با گره های Ranvier در فواصل مختلف در طول طول آن.
آکسون های غیرمترقبه [ویرایش |منبع ویرایش]
پتانسیل عمل منجر به دفع قطبش غشاء بلافاصله در جلو (و پشت) می شود. این غشای در حالت نسوز قرار دارد ، بنابراین پتانسیل عمل فقط در 1 جهت انجام می شود. این در آکسون های کوچک امکان پذیر است ، اما گسترش جریان کند است.
آکسون های میل شده [ویرایش |منبع ویرایش]
دنباله مشابه وقایع مانند آکسون های غیرمجاز. با این حال تفاوت معنی داری وجود دارد. عملکرد پیشرفت در حال پیشرفت با مقاومت بالا ، ساختار کم سرمایه ای - میلین پیچیده شده در اطراف آکسون روبرو می شود. جریان دپولاریزه در امتداد آکسوپلاسم عبور می کند ، تا اینکه با مقدار زیادی از کانال های NA+ به گره مقاومت کم Ranvier برسد. پتانسیل عمل سپس در این سایت ایجاد می شود. پتانسیل عمل از گره به گره انجام می شود. به این کار هدایت نمکی گفته می شود.
مزایای میلین
- امکان هدایت سریع پتانسیل عمل را فراهم می کند
- تقاضای متابولیک روی سلول را به حداقل می رساند.
- ظرفیت بسته بندی NS را افزایش می دهد و باعث می شود الیاف بیشتری در 1 عصب قرار گیرند.
بیشتر اعصاب بیشتر از 1 میکرون میلین می شوند.
اختلالات در هدایت معمولاً به دلیل آسیب شناسی دیمیلیناسیون است. آنها شامل سندرم Guillan Barre و مولتیپل اسکلروز هستند.
ادغام بعد از سیناپسی:
هر نورون مرکزی صدها سیناپس را دریافت می کند. هر یک از این ورودی ها از آن در پاسخ توسط آن نورون خاص است. این شامل پردازش تمام ورودی هایی است که به هر زمان وارد می شوند. به این جمع بندی فضایی گفته می شود. ورودی های پردازش در طی یک دوره زمانی مشخص ، جمع بندی زمانی نامیده می شود. ترکیبی از سیناپسهای تحریکی و مهاری در این مرحله وجود خواهد داشت.
پتانسیل های تحریک آمیز پس از سیناپسی
- اتصال انتقال دهنده عصبی منجر به باز شدن کانال های یونی می شود.
- در فرآیند پس از سیناپسی هجوم کاتیون وجود دارد
- دفع قطبش غشای رخ می دهد.
- دپلاریزاسیون های EPSPS ثبت شده در سلول پس از سیناپسی به یک محرک تحریکی خاص.
- DePolariations Assoc. اگر EPSP ها در صورت جمع شدن در سیناپس می توانند APS را تحریک کنند.
پتانسیل های مهار کننده پس سیناپسی
- کانال های یونی اجازه می دهند هجوم آنیون پس سیناپسی هنگام باز.
- بیش از حد قطبش غشای به دلیل هجوم Cl- و جریان k+ رخ می دهد
- برای تعدیل پاسخ نورون ها به ورودی تحریکی در سیناپس مهم است.
- در مکانهای مهم استراتژیک نورون مانند دندریت پروگزیمال و سوما یافت می شود.
- آنها تأثیر زیادی در درخت دندریتیک دارند
- برخی از نورون ها با داشتن وثیقه های آکسون و inteeurons مهاری خود ، تأثیر مهاری خود را فراهم می کنند. این به عنوان مهار بازخورد نامیده می شود. به عنوان مثال. سلولهای Motoeurons و Renshaw در نخاع.
انتقال دهنده های عصبی ، گیرنده ها و مسیرها [ویرایش |منبع ویرایش]
انتقال دهنده عصبی در سیناپس آزاد می شود و با یک پروتئین خاص در غشای پس سیناپسی به نام گیرنده کار می کند. در برخی از سیناپس ها ، انتقال دهنده عصبی نیز ممکن است با یک دستگاه گیرنده پیش سیناپسی در تعامل باشد. PSA به عنوان تنظیم کننده میزان فرستنده آزاد شده عمل می کند.
گیرنده ها به طور معمول برای یک انتقال دهنده عصبی خاص خاص هستند. انواع مختلفی از گیرنده وجود دارد. انتقال دهنده های عصبی منتشر شده ممکن است اتصال فرستنده دیگر را تنظیم کند.
گیرنده های انتقال دهنده های عصبی خاص ممکن است یا مستقیماً به کانال های یونی یا آنزیم غشایی همراه شوند که در آن اتصال انتقال دهنده عصبی به گیرنده یا یک کانال یونی را از طریق یک آبشار آنزیم داخل سلولی یا غیر مستقیم تعدیل می کند که احتمال سایر کانال های یونی را که در پاسخ به ولتاژ باز می شود ، تعدیل می کند. تغییر می کند.(عصبی سازی)
گیرنده فعال شده فقط می تواند به محض حذف انتقال دهنده عصبی با فرآیند هیدرولیز آنزیمی (جذب) به ترمینال عصبی پیش سیناپسی یا به سلولهای گلیال مجاور ، به حالت استراحت خود بازگردد.
تنظیم حساسیت/پایین تنظیم: کاهش میل در گیرنده برای فرستنده در کوتاه مدت ، در طولانی مدت ، این منجر به کاهش تعداد گیرنده ها می شود.
تنظیم حساسیت/UP: افزایش میل به گیرنده برای فرستنده در کوتاه مدت می تواند منجر به افزایش کانال ها در طولانی مدت شود.
- یونوتروپیک: N-Methyl-D-aspartate (NMDA)
- غیر NMDA
- متابوتروپیک: گیرنده های گلوتامات مرتبط با پروتئین G که با شروع وقایع بیوشیمیایی داخل سلولی پاسخ می دهند و انتقال سیناپسی را تعدیل می کنند.
تعداد زیادی از انتقال دهنده های عصبی وجود دارد:
- اسیدهای آمینه تحریک آمیز: اینها NT های اصلی تحریک کننده در CNS هستند. NT اصلی در این گروه گلوتامات است که در تعدادی از گیرنده ها عمل می کند.
- اسیدهای آمینه مهاری: اینها انتقال دهنده های اصلی عصبی مهاری هستند که اصلی ترین آنها GABA است که در سراسر CNS وجود دارد. گلیسین ، که عمدتا در نخاع یافت می شود.
- مونوامین ها: در گروه های کوچکی از نورون ها در ساقه مغز یافت می شود و به طور گسترده ای در CNS قرار می گیرد. در NS خودمختار یافت می شود. آنها به تعداد زیادی از گیرنده ها متصل می شوند.
- استیل کولین: به طور گسترده در سراسر سیستم عصبی ، از جمله اتصال عصبی عضلانی و NS خودمختار توزیع می شود.
- نوروپپتیدها: در سراسر NS یافت می شود. غالباً همزمان با سایر NT ها آزاد می شوند.
علاوه بر این ، بیش از 50 پپتید عصبی پیدا شده است ، و موارد جدید به طور مرتب کشف می شوند. بسیاری از این موارد به همراه یک فرستنده مولکول کوچک "منتشر شده" هستند. با این وجود ، در بعضی موارد پپتید فرستنده اصلی در سیناپس است. β- اندورفین نمونه ای نسبتاً شناخته شده از یک انتقال دهنده عصبی پپتید است زیرا درگیر تعامل بسیار خاص با گیرنده های مواد افیونی در سیستم عصبی مرکزی است.
یونهای منفرد (مانند روی منتشر شده سیناپسی) نیز توسط برخی از انتقال دهنده های عصبی در نظر گرفته می شوند ، و همچنین برخی از مولکول های گازی مانند اکسید نیتریک (NO) ، مونوکسید کربن (CO) و سولفید هیدروژن (H2S). گازها در سیتوپلاسم عصبی تولید می شوند و بلافاصله از طریق غشای سلولی به داخل مایع خارج سلولی و به سلولهای اطراف پخش می شوند تا تولید پیام رسان های دوم را تحریک کنند. انتقال دهنده های عصبی گاز محلول برای مطالعه دشوار است ، زیرا آنها به سرعت عمل می کنند و بلافاصله شکسته می شوند ، تنها برای چند ثانیه وجود دارد.
شایع ترین فرستنده گلوتامات است که بیش از 90 ٪ سیناپسهای موجود در مغز انسان تحریک کننده است. شیوع بعدی بعدی گاما آمینوبوتیریک اسید یا GABA است که در بیش از 90 ٪ سیناپس هایی که از گلوتامات استفاده نمی کنند ، مهاری است. اگرچه سایر فرستنده ها در سیناپس های کمتری استفاده می شوند ، ممکن است از نظر عملکردی بسیار مهم باشند: اکثریت زیادی از داروهای روانگردان با تغییر اقدامات برخی از سیستم های انتقال دهنده عصبی ، که اغلب از طریق فرستنده های غیر از گلوتامات یا GABA عمل می کنند ، اثرات خود را اعمال می کنند. داروهای اعتیاد آور مانند کوکائین و آمفتامین اثرات خود را در درجه اول بر روی سیستم دوپامین اعمال می کنند. داروهای مواد مخدر اعتیاد آور اثرات خود را در درجه اول به عنوان آنالوگ عملکردی پپتیدهای مواد افیونی اعمال می کنند ، که به نوبه خود سطح دوپامین را تنظیم می کنند.
منابع [ویرایش |منبع ویرایش]
- ↑ Smelser NJ ، Baltes PB ، ویراستاران. دائر ycl المعارف بین المللی علوم اجتماعی و رفتاری. آمستردام: Elsevier ؛2001 نوامبر 1. در دسترس است از: https: //www. sciencedirect. com/topics/neuroscience/neurophysiology (آخرین دسترسی به 19. 12. 2020)
- ↑ بارکر ؛باراسی ؛نیلعلوم اعصاب در یک نگاه ؛Blackwell Science Ltd ؛سال 1999

ما را در سایت پرسش و پاسخ بورس دنبال می کنید
برچسب :
نویسنده : ماندانا اصلانی
بازدید : <-PostHit->
خبرنامه
